Vildagliptin × SScENEnglish

Um remédio para diabetes pode acalmar as células que endurecem a pele?

A vildagliptina bloqueia a enzima DPP-4. Na esclerose sistêmica, a DPP-4 marca os fibroblastos que soterram a pele em colágeno. Em sete dias, uma equipe de hackathon testou se essa sobreposição merece um experimento de bancada.

Veredito Avançar para um experimento de prova de mecanismo. Não é uma afirmação de que funciona em pacientes.

Cortellis Drug Repositioning Hackathon
agosto de 2026, sete dias
Camadas de evidência
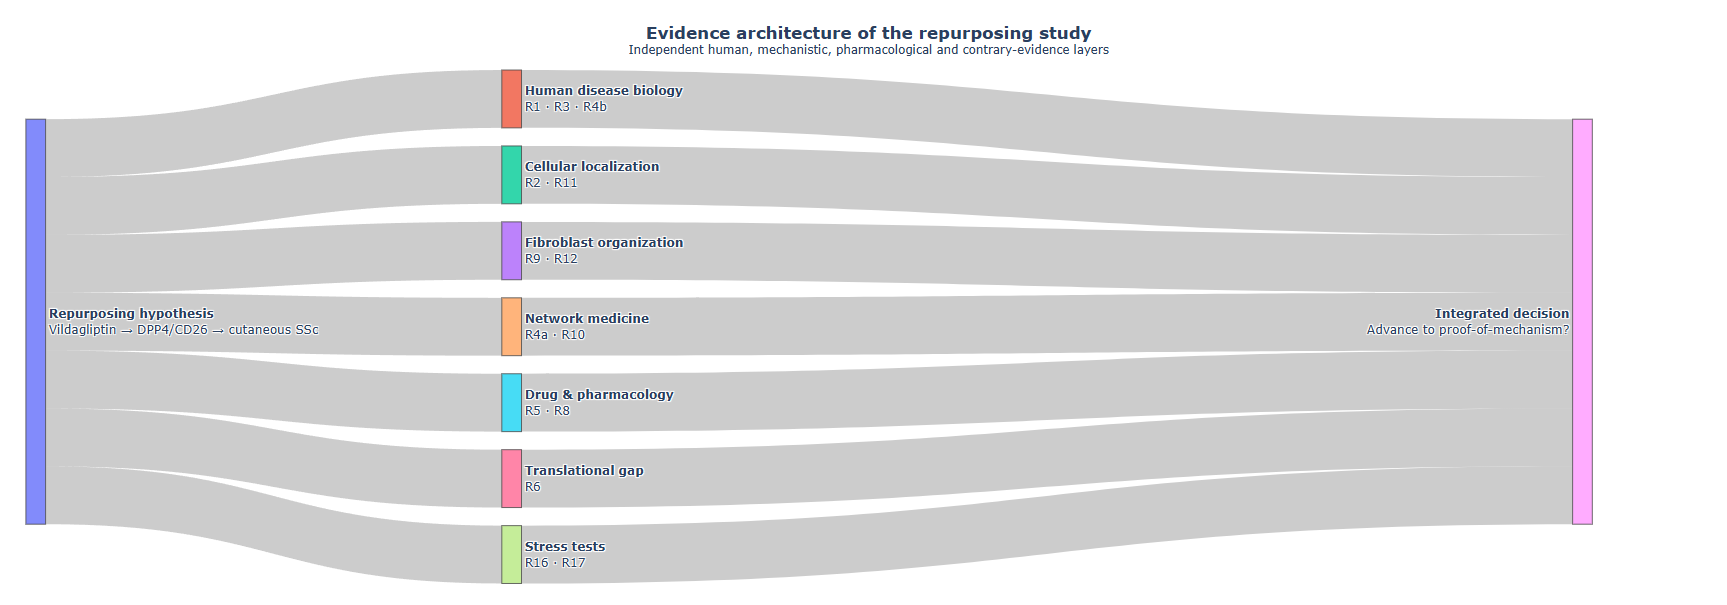
sete, testadas de forma independente
Coortes de pele humana
quatro bases públicas
0%

Deposição de matriz 100%

Esquema da hipótese, não dados. Células rosa: fibroblastos DPP4⁺. Fios rosa: colágeno.

Uma pele que não para de construir

A esclerose sistêmica (esclerodermia) é uma doença autoimune em que os fibroblastos da derme ficam ligados. Eles depositam colágeno e outros componentes da matriz extracelular (MEC) até a pele engrossar e enrijecer 1–3. Clinicamente, esse espessamento é graduado pelo escore cutâneo de Rodnan modificado, o mRSS, desfecho padrão de pele nos ensaios 1,4,5.

Não há cura. As recomendações atuais se apoiam em imunossupressão e tratamento órgão-específico, com efeito variável e muitas vezes parcial sobre a pele 6–9. Novos agentes estão em teste, mas o arsenal voltado à fibrose cutânea em si é escasso 10,11.
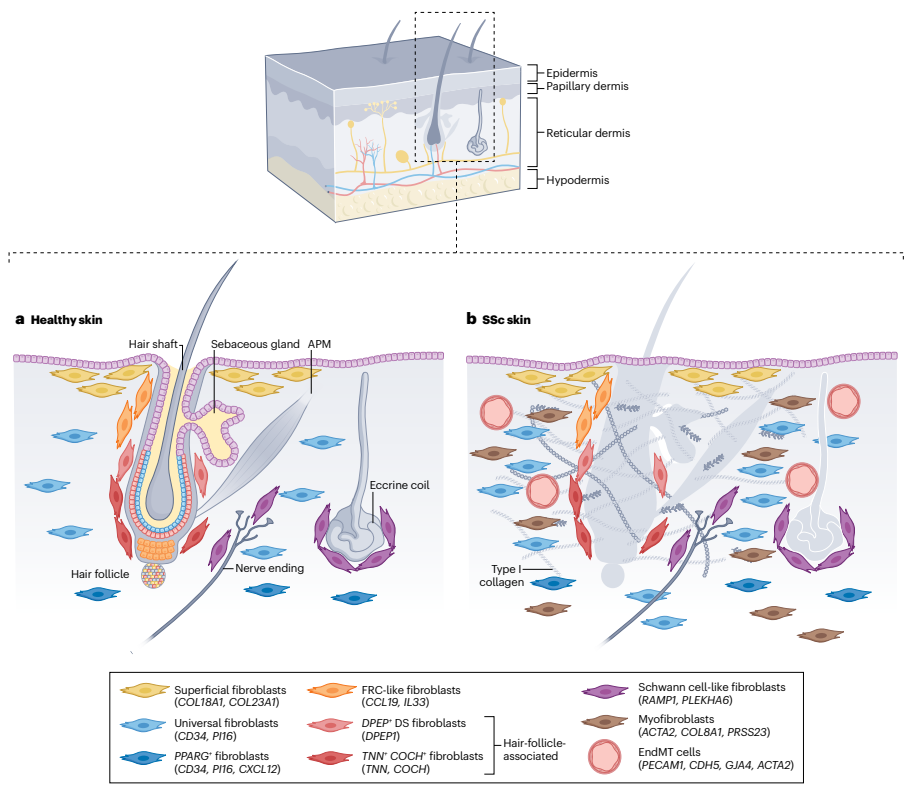
Corte ilustrado de pele saudável e com esclerose sistêmica, mostrando subtipos de fibroblastos, miofibroblastos e fibras de colágeno tipo I.
Populações de fibroblastos na pele saudável e na pele com ES. Na ES surgem miofibroblastos e somem estruturas anexiais à medida que o colágeno tipo I se acumula. Reproduzido de Distler et al. 1, Nat. Rev. Rheumatol. (2026).

A aposta: um fármaco, um alvo, uma célula

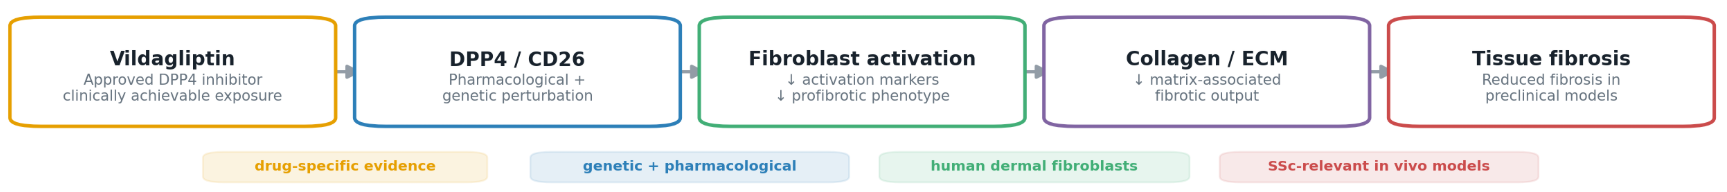
Reposicionar dá certo quando um fármaco aprovado já atinge um alvo presente nas células que movem a doença. Aqui, cada elo dessa cadeia tem apoio publicado. Selecione um elo para vê-lo.

A vildagliptina é um inibidor potente e seletivo de DPP-4/CD26, com longo uso clínico 12,13. Num modelo de bleomicina, reduziu a deposição de matriz, colágeno e fibronectina 14.

Ver a figura originalFigura original: A aposta: um fármaco, um alvo, uma célula
Fármaco
Vildagliptina: inibidor oral de DPP-4 aprovado para diabetes tipo 2, com perfil de segurança de longo prazo.
Alvo
DPP-4/CD26 (ENSG00000197635), com funções enzimáticas e não enzimáticas.
Doença
Esclerose sistêmica, subtipo cutâneo difuso inicial: fibrose dérmica progressiva.
Célula-alvo
Fibroblasto dérmico SFRP2⁺/DPP4⁺, progenitor de miofibroblasto 3.
Desfecho
mRSS 4,5.
Desenvolvimento
Nenhum ensaio registrado de qualquer gliptina em esclerose sistêmica, esclerodermia ou morfeia 20.
Lacuna declarada
Sem apoio de genética humana: DPP4 não está entre as principais associações do Open Targets para ES 21.
Critério de decisão
Seguir apenas se o sinal de DPP4 na pele for fibroblástico, e não linfocitário.

A molécula

A vildagliptina se liga à DPP-4 com potência nanomolar 12,22. As parentes DPP-8, DPP-9 e FAP ficam de uma a três ordens de grandeza mais longe, então, na exposição terapêutica, o fármaco é essencialmente uma ferramenta contra a DPP-4 22. Foi escolhida entre as gliptinas por reunir evidência antifibrótica dirigida à DPP-4, via oral, farmacologia humana conhecida e viabilidade imediata 13,14.

Seletividade em uma só escala logarítmica

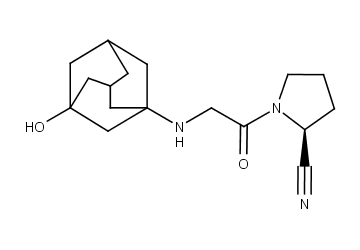
Fórmula estrutural da vildagliptina: uma amina hidroxiadamantílica ligada por um espaçador glicil a uma cianopirrolidina.
Vildagliptina, C₁₇H₂₅N₃O₂.
IC₅₀ em nM. DPP-4: mediana de 68 medidas in vitro. Arraste o marcador para definir uma exposição e ver quais enzimas ela inibiria pela metade. Fonte: Cortellis 22.

O que já se sabia

A biologia não era nova. Antes do hackathon, sete frentes de trabalho já apontavam na mesma direção. Faltava testar a cadeia inteira em dados de pele humana.

  • Pele de pacientesA DPP-4 marca fibroblastos ativados nas lesões de ES 15.
  • Fibroblastos humanosInibir ou depletar a DPP-4 reduz a síntese de matriz 15,23.
  • BioquímicaA DPP-4 solúvel ativa fibroblastos via PAR-2 e NF-κB/SMAD 23; o processamento da fibronectina pela DPP-4 monta uma matriz pró-fibrótica 24.
  • Modelos animaisGliptinas reduzem fibrose; a linagliptina fez isso no pulmão de um modelo murino de ES 14,25.
  • Pele e cicatrizesDPP-4 e uroquinase são moléculas-chave da cicatrização em humanos e camundongos 26; inibir a DPP-4 reativa folículos pilosos 27; microagulhas de sitagliptina previnem cicatrizes convertendo fibroblastos em adipócitos 28, o inverso do bloqueio por TGFβ que favorece a fibrose cutânea 29.
  • EpidemiologiaEm 5.430 pacientes diabéticos submetidos a esternotomia no Japão, o uso de inibidores de DPP-4 se associou a menos cicatrizes hipertróficas e queloides 30, achado depois discutido na mesma revista 31.
  • Transcriptomas de pacientesGrandes coortes de expressão gênica da pele permitem testar programas fibróticos diretamente contra o mRSS 32–35.
  • Outros órgãosA DPP-4 é alvo antifibrótico em modelos de pulmão, fígado e rim 36.
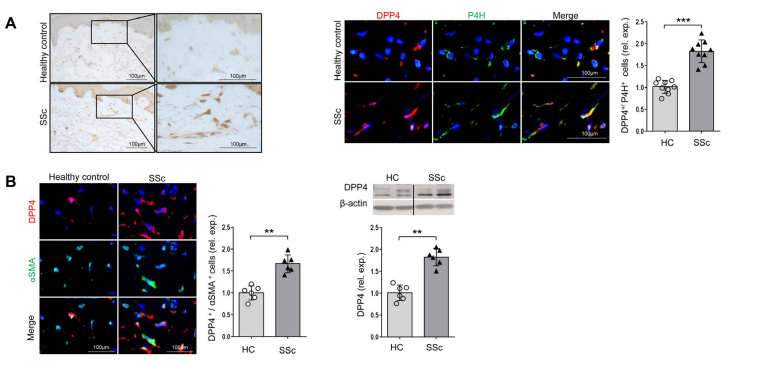
Painéis de imuno-histoquímica e imunofluorescência de pele com ES e saudável, com gráficos de barras mostrando mais células DPP4⁺ P4H⁺ e DPP4⁺ αSMA⁺ na ES.
Fibroblastos DPP4⁺ estão aumentados na pele com ES e coexpressam o marcador de miofibroblasto αSMA. Reproduzido de Soare et al. 15, Arthritis Rheumatol. (2020).

Sete camadas, cada uma capaz de dizer não

A análise rodou num cluster de computação e foi reunida num único notebook. Cada camada usou dados diferentes e podia falhar sozinha. Selecione uma camada para ir ao resultado.

Ver a figura originalFigura original: Sete camadas, cada uma capaz de dizer não

Sustenta

O processo fibrótico está presente na pele dos pacientes?

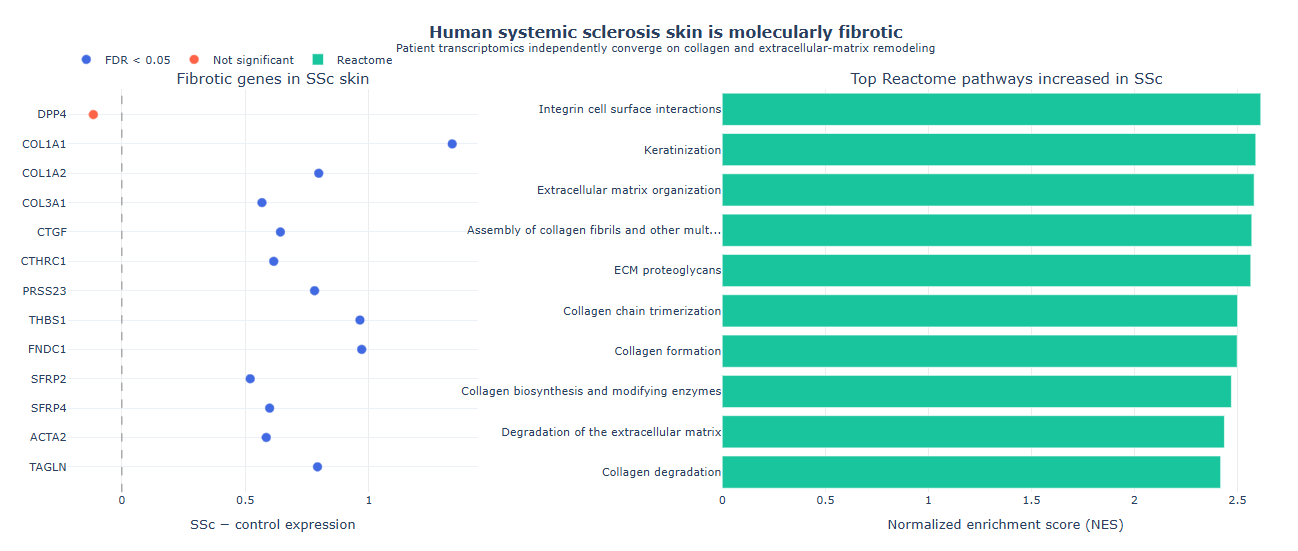
Transcriptomas de pele (bulk), ES vs controle 37. Expressão diferencial de 13 genes de fibrose pré-especificados e enriquecimento de conjuntos gênicos do Reactome 38.

Ver a figura originalFigura original: O processo fibrótico está presente na pele dos pacientes?

Sim, com força. Colágenos, THBS1, PRSS23 e os genes de miofibroblasto ACTA2 e TAGLN estão todos aumentados, e as dez vias mais enriquecidas são programas de matriz e colágeno. O próprio DPP4 não aumenta. Se a DPP-4 importa, importa num estado celular específico, não no tecido inteiro.

Sustenta

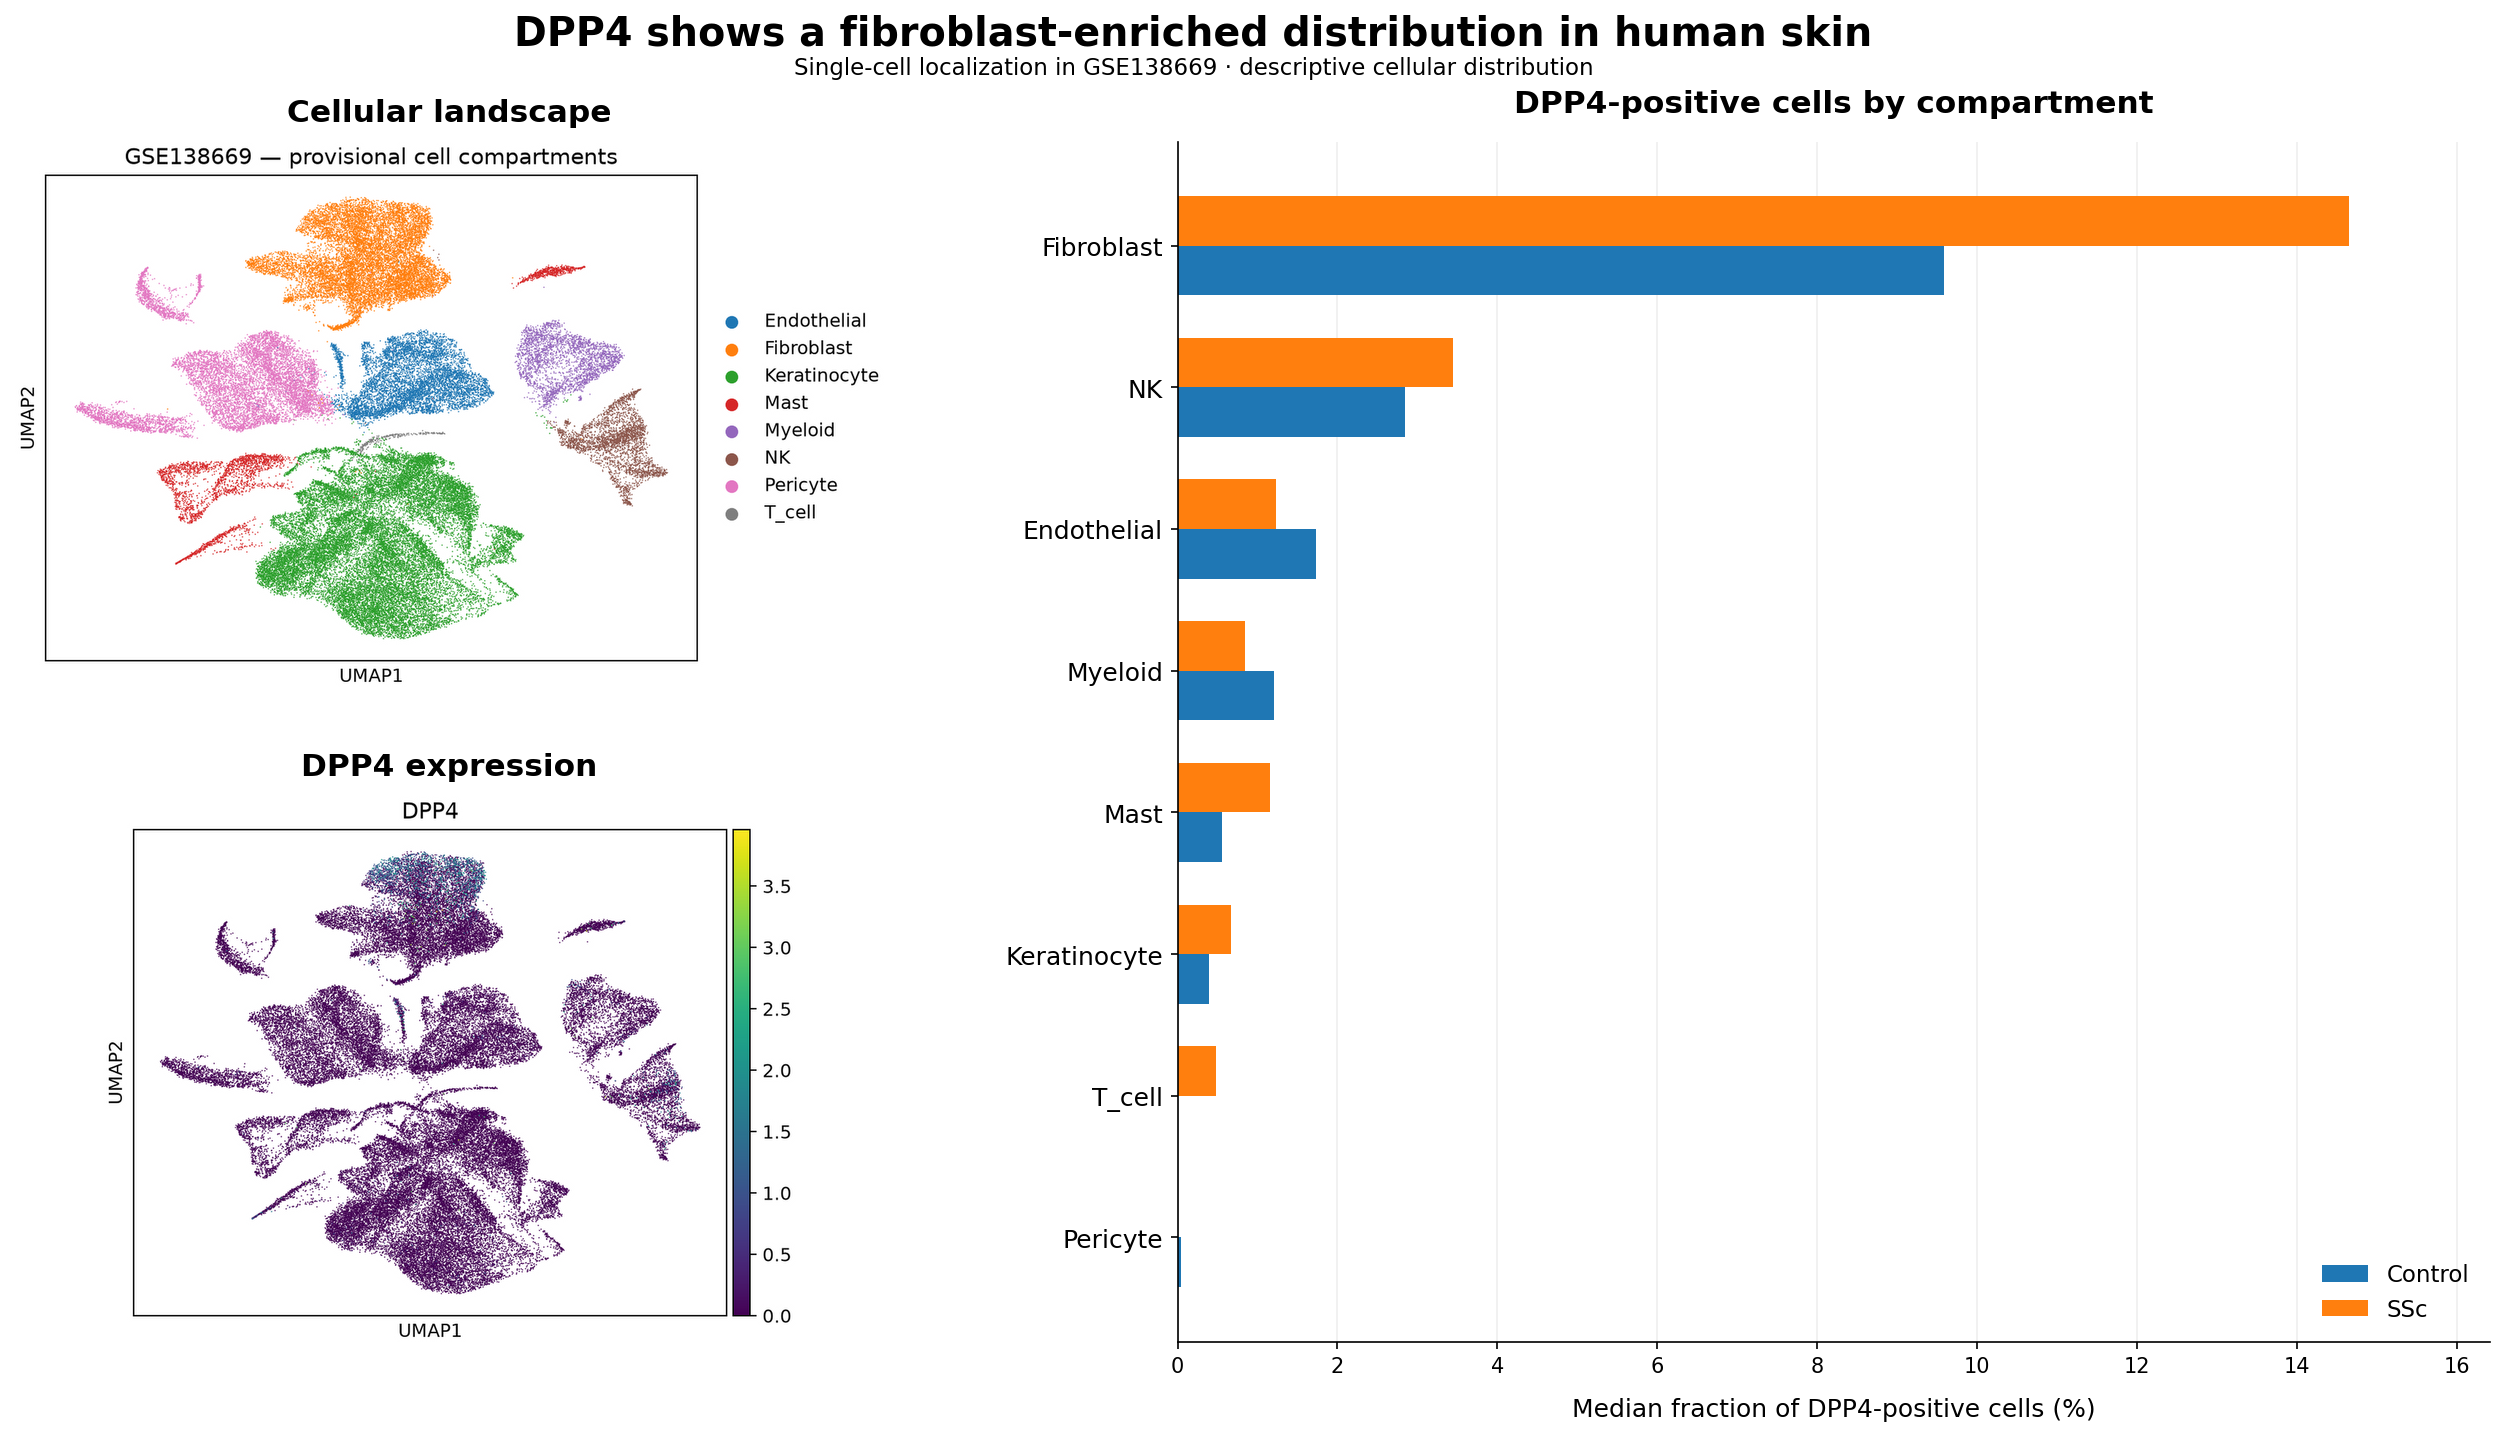
Se o DPP4 não sobe no geral, quais células o carregam?

RNA-seq de célula única de pele com ES e saudável 39, analisado com Scanpy e Harmony 40,41.

Ver a figura originalFigura original: Se o DPP4 não sobe no geral, quais células o carregam?

Os fibroblastos, com folga. Fibroblastos DPP4-positivos chegam a uma mediana de cerca de 15% na ES contra cerca de 10% nos controles; nenhum outro compartimento passa de 4%. O critério de decisão foi cumprido: o sinal de DPP4 na pele é fibroblástico, não linfocitário.

Sustenta

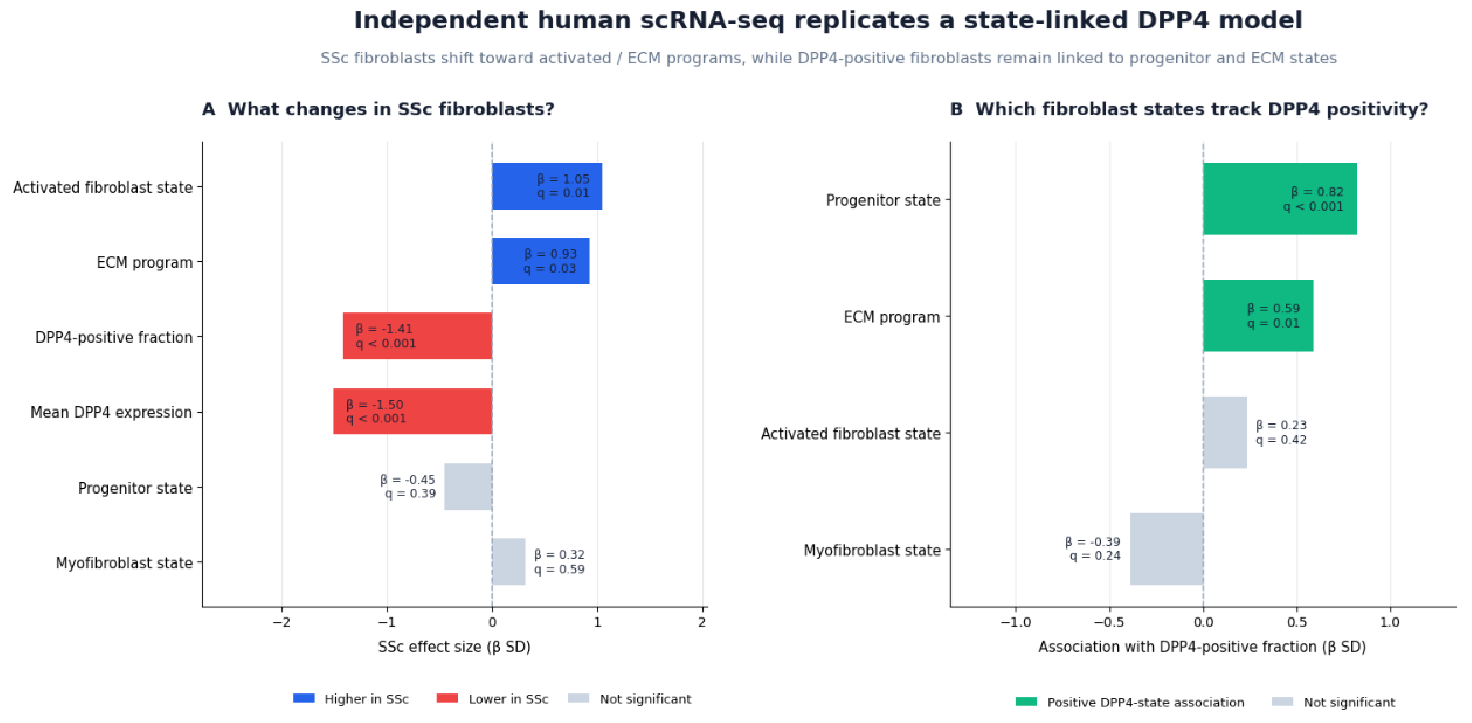
Uma coorte independente concorda?

Uma segunda coorte de pele em célula única 42. Escores de estado por doador, regressão robusta; β em desvios-padrão, q após correção de Benjamini–Hochberg.

Ver a figura originalFigura original: Uma coorte independente concorda?

Em parte, e a divergência ensina. Os fibroblastos da ES se deslocam para programas ativados e de MEC, enquanto a fração DPP4-positiva é menor nesta coorte. Dentro dos doadores, a positividade para DPP4 continua acompanhando os estados progenitor (β = 0,82) e de MEC (β = 0,59). DPP4 marca um estado, não uma quantidade que sobe com a doença.

Refina o modelo

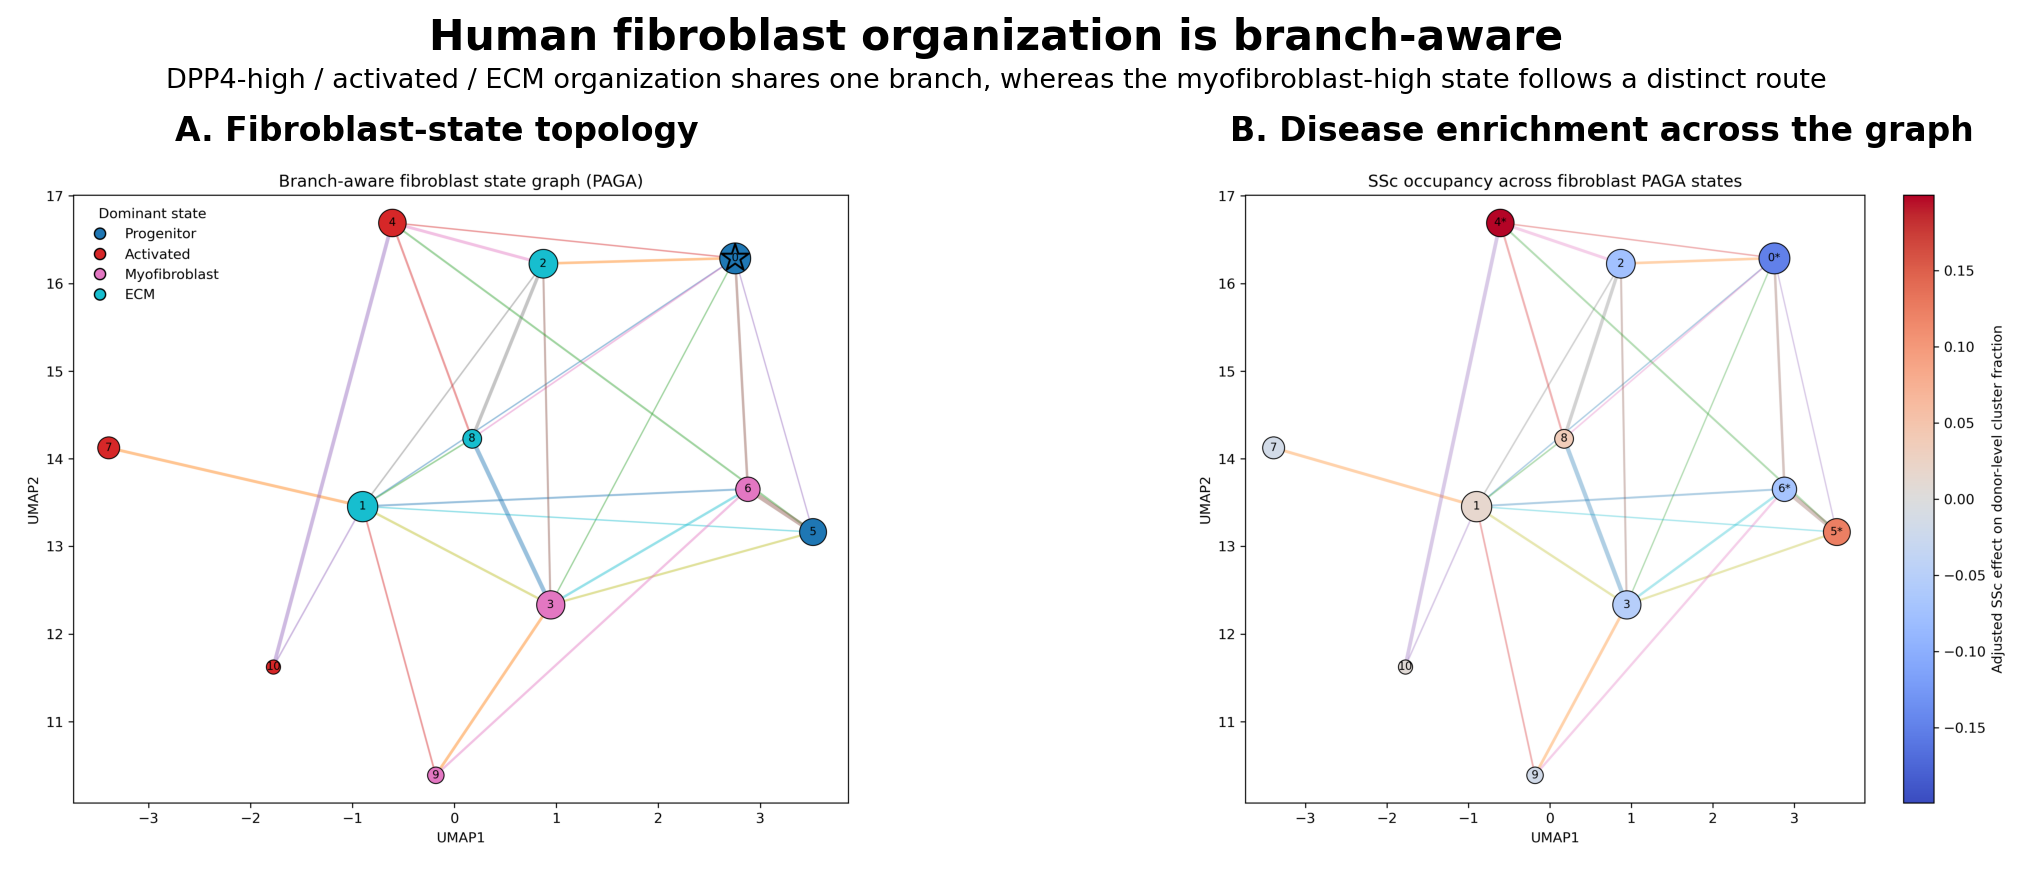
Um caminho para a fibrose, ou vários?

Reconstrução do grafo de fibroblastos com PAGA 43 em 39; a cor do nó é o efeito ajustado da ES sobre a ocupação por doador.

Ver a figura originalFigura original: Um caminho para a fibrose, ou vários?

Vários. Estados DPP4-alto, ativado e de MEC dividem um ramo (0 → 2 → 4). O estado rico em miofibroblastos segue uma rota parcialmente separada (0 → 6 → 9). A ES enriquece estados selecionados em vez de inflar o grafo todo. PAGA mostra conectividade, não direção de linhagem.

Refina o modelo

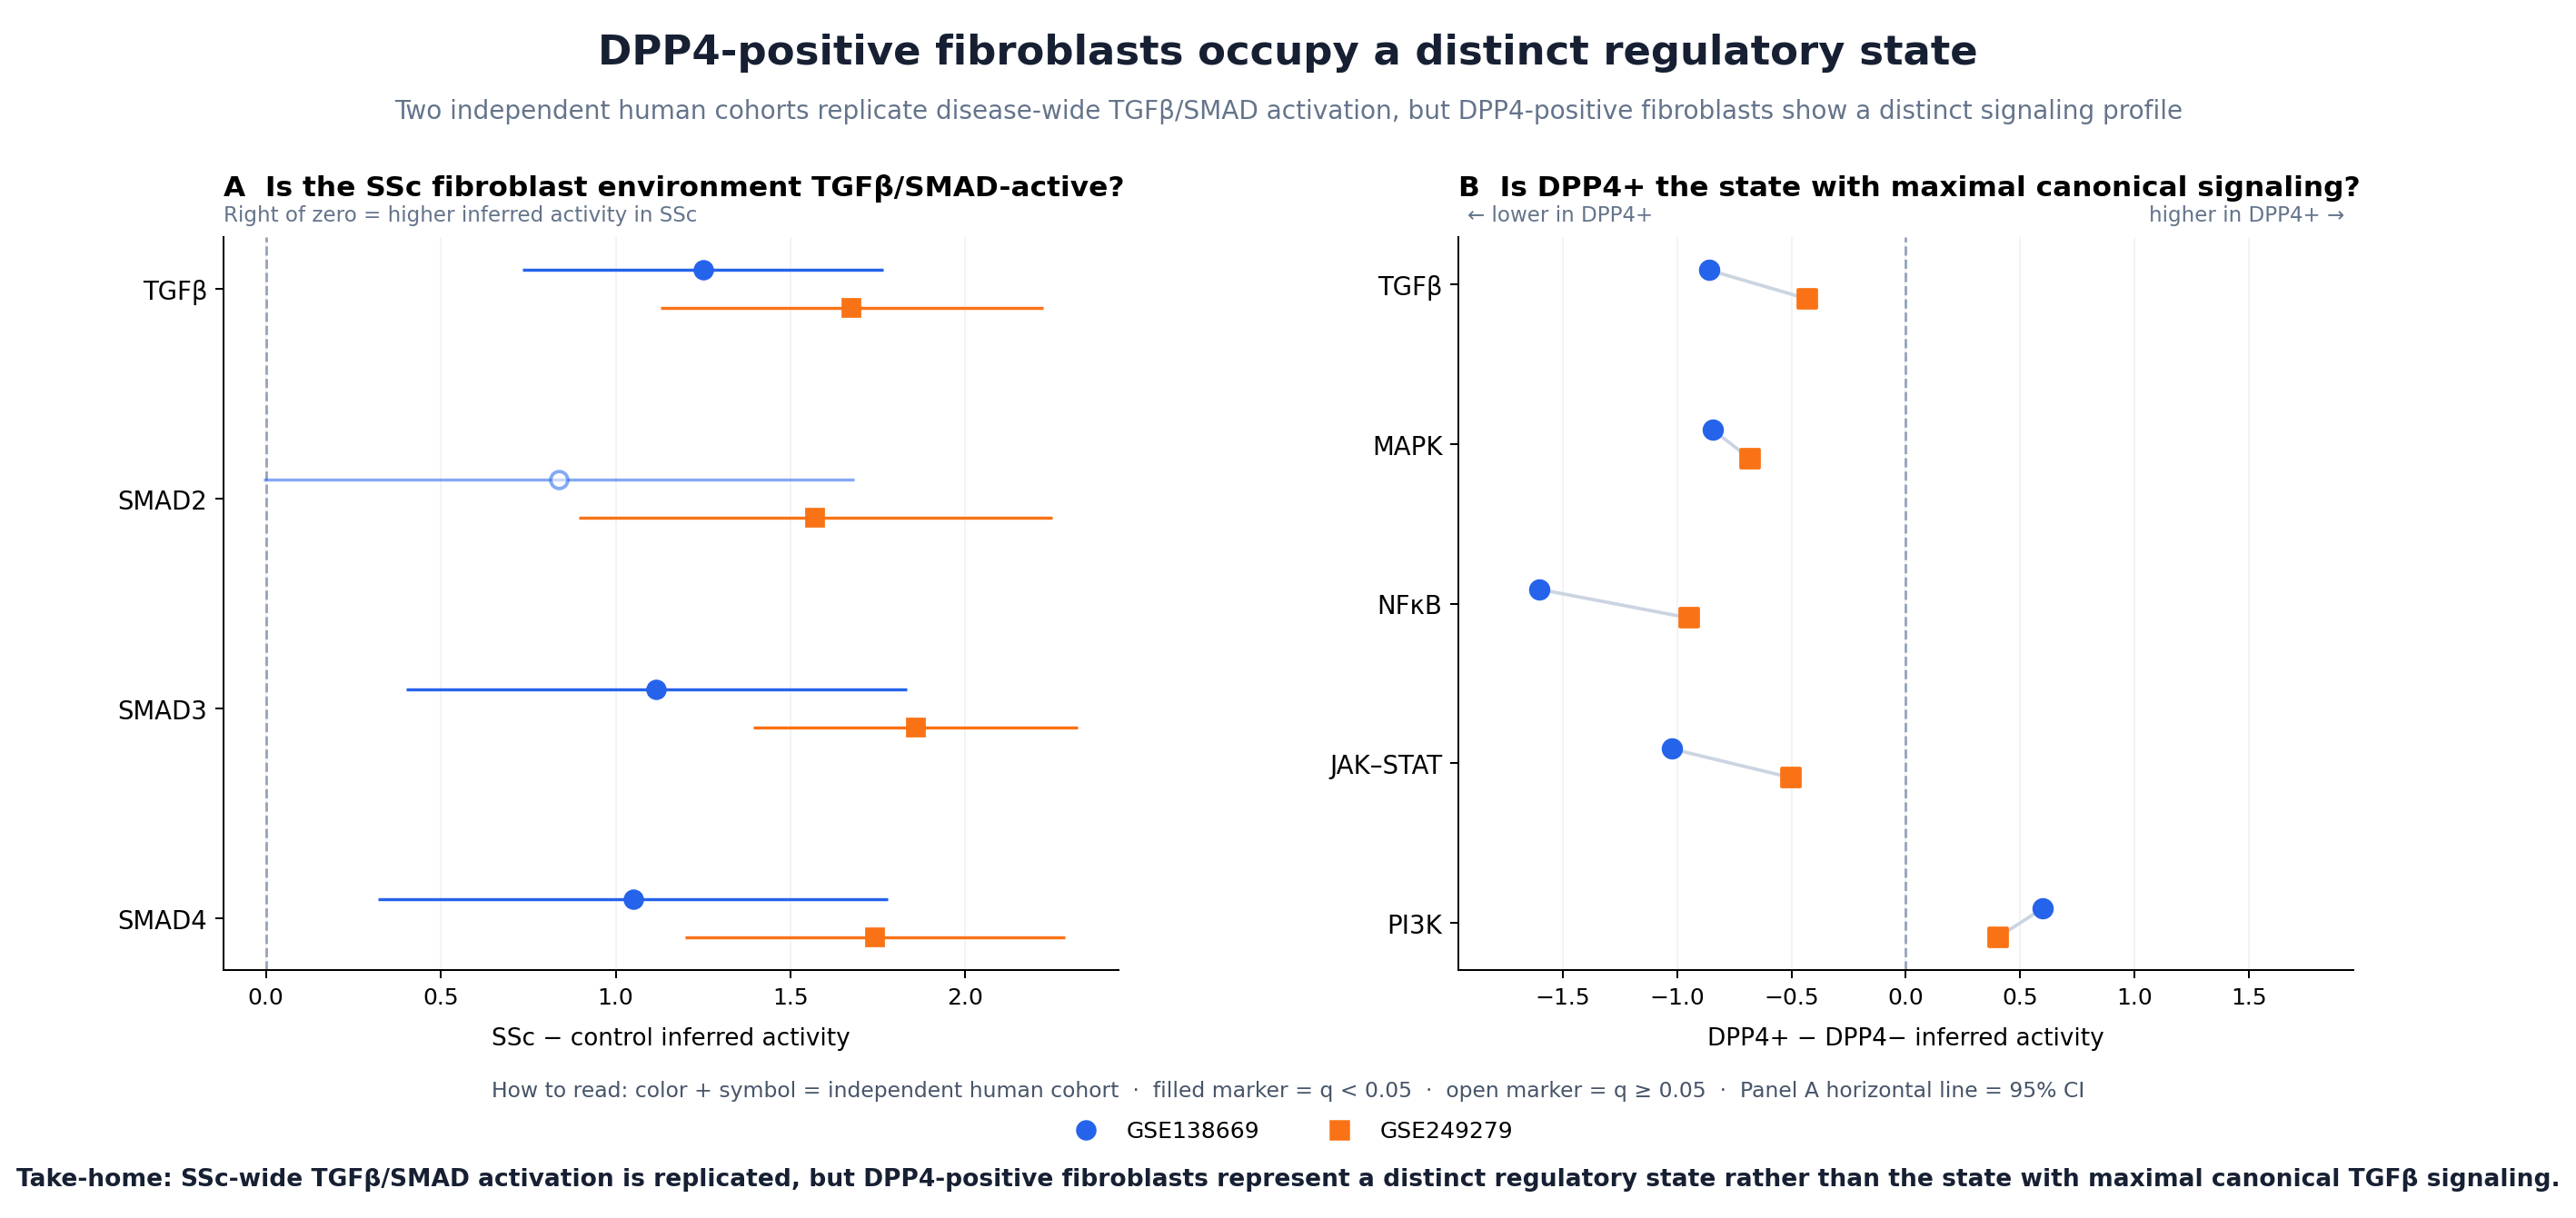
Os fibroblastos DPP4⁺ são o estado de sinalização mais pró-fibrótico?

Pseudobulk de fibroblastos de duas coortes 39,42. Atividade de vias e de fatores de transcrição com decoupler 44, PROGENy 45 e CollecTRI 46.

Ver a figura originalFigura original: Os fibroblastos DPP4⁺ são o estado de sinalização mais pró-fibrótico?

Não. As duas coortes replicam um ambiente de doença com TGFβ/SMAD ativo. Mas os fibroblastos DPP4⁺ mostram atividade menor de TGFβ, MAPK, NF-κB e JAK–STAT do que as células DPP4⁻, e maior de PI3K. Ocupam um estado regulatório distinto e mais quieto, coerente com progenitores, não com efetores.

Sustenta

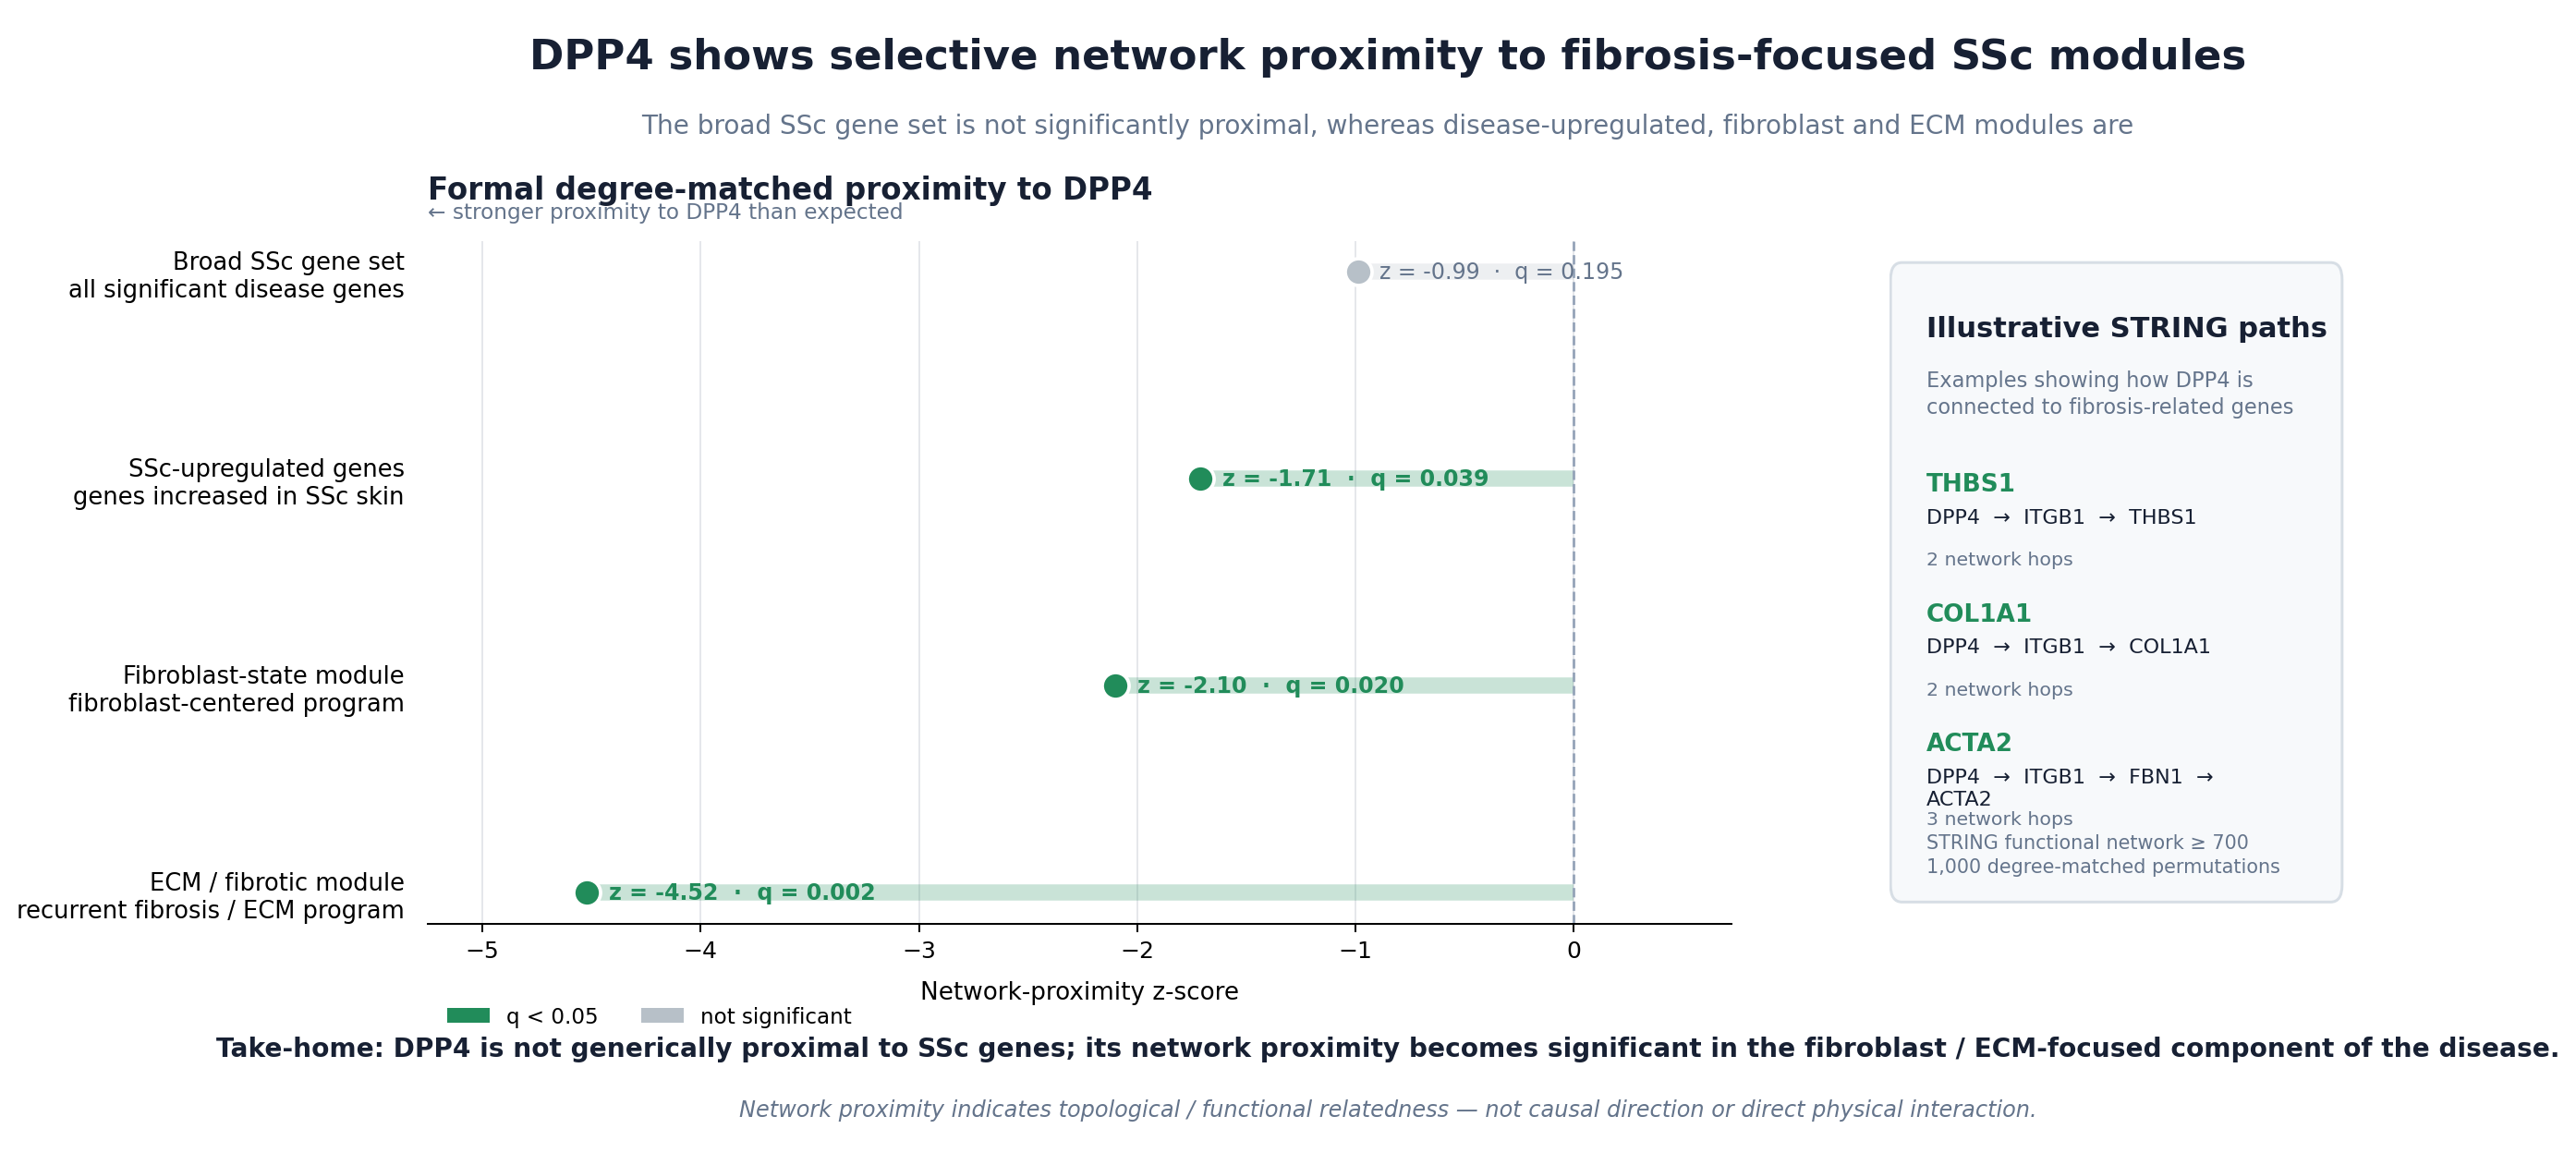
O DPP4 está perto da doença na rede de proteínas?

Rede funcional STRING v12, confiança ≥ 700 47; proximidade em rede contra 1.000 conjuntos aleatórios pareados por grau 48.

Ver a figura originalFigura original: O DPP4 está perto da doença na rede de proteínas?

Perto do núcleo fibrótico, não da doença como um todo. A proximidade não é significativa para o conjunto amplo de genes da ES (z = −0,99) e cresce em direção ao módulo de MEC (z = −4,52, q = 0,002). Essa seletividade é o que se espera de um alvo antifibrótico a jusante.

Sustenta

Esses programas acompanham a gravidade da pele?

Transcriptomas de pele com mRSS basal 49; correlação de Spearman, depois modelos ajustados por covariáveis.

Ver a figura originalFigura original: Esses programas acompanham a gravidade da pele?

Os programas a jusante, sim: ativado (ρ = 0,70), miofibroblasto (0,69) e MEC (0,55) resistem ao ajuste. O próprio DPP4, não (ρ = −0,21). Ele é uma alça sobre o estado a montante, não um biomarcador de gravidade.

Sustenta

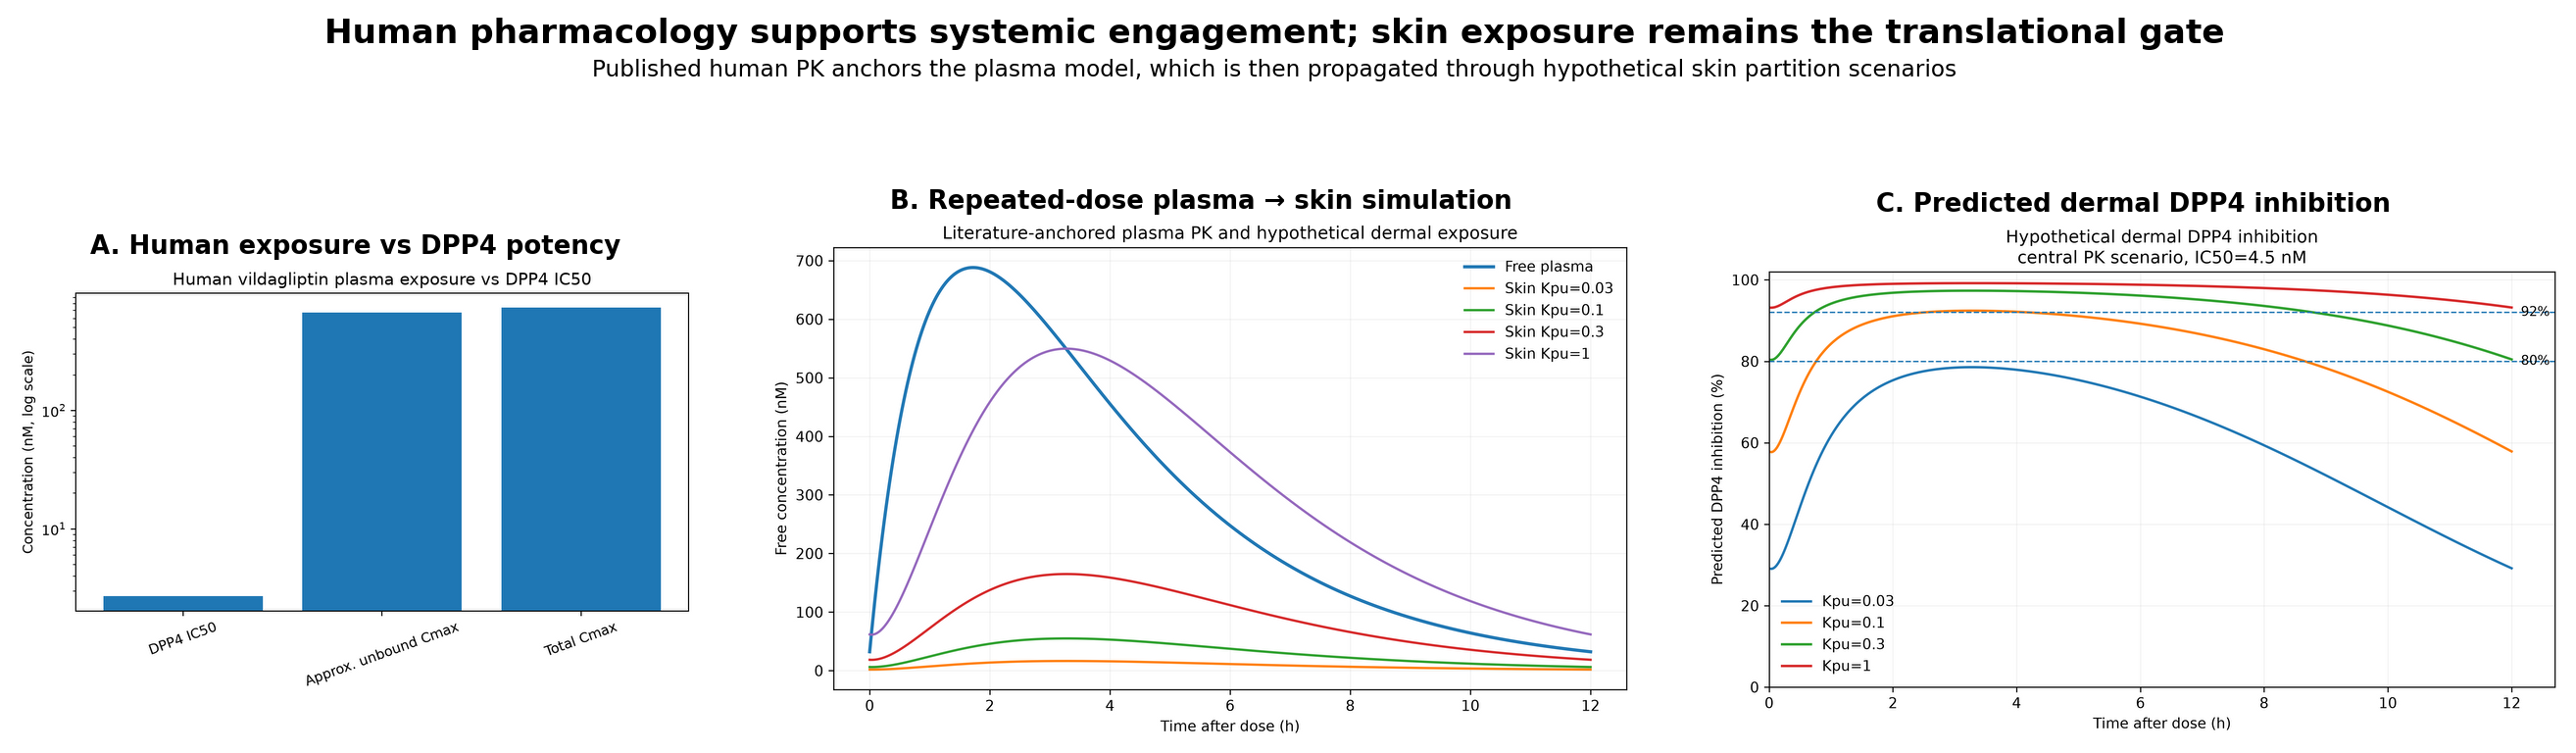
Uma dose comum alcança a DPP-4 na pele?

50 mg duas vezes ao dia. Plasma ancorado em farmacocinética humana publicada; pele modelada como análise de sensibilidade de partição (Kpu = razão pele/plasma). Não são dados medidos na pele. O explorador abaixo reimplementa o modelo e reproduz a tabela de limiares do estudo.

Ver a figura originalFigura original: Uma dose comum alcança a DPP-4 na pele?

Sistemicamente, com folga: os níveis plasmáticos livres ficam muito acima do IC₅₀ da DPP-4. Na pele, tudo depende de um número que ninguém mediu. Manter ≥ 80% de inibição durante metade de cada intervalo de dose exige Kpu ≥ 0,10; manter ≥ 92% durante 80% dele exige Kpu ≥ 0,50. A exposição cutânea é a porta que um experimento pode abrir.

Sustenta

Alguém já está fazendo isso?

PubMed, ClinicalTrials.gov 20 e uma revisão manual no Cortellis 22.

Não nos registros revisados. A base pré-clínica para a DPP-4 na ES existe desde 2020 15,36, e mesmo assim não se encontrou nenhum ensaio intervencional de vildagliptina ou de qualquer gliptina para fibrose cutânea na ES. A oportunidade é translacional, não uma novidade biológica.

O que os dados recusaram

Uma hipótese que sobrevive a todos os testes provavelmente não foi testada com rigor suficiente. Estes resultados estreitaram o modelo; aparecem aqui com o mesmo peso do apoio.

  1. O DPP4 não está aumentado no geral

    Nem na pele em bulk, e está mais baixo numa das coortes de célula única. O modelo precisou passar de "mais DPP-4" para "um estado marcado por DPP-4".

  2. O DPP4 não é marcador de gravidade

    ρ = −0,21 com o mRSS. Seu valor está em ser uma alça sobre os progenitores, não uma leitura.

  3. Não há uma trajetória linear única

    Miofibroblastos podem ser alcançados por uma rota que contorna o ramo DPP4-alto. Inibir a DPP-4 pode frear um caminho, não fechar todos.

  4. Não é o estado mais pró-fibrótico

    Fibroblastos DPP4⁺ têm atividade canônica de TGFβ, MAPK, NF-κB e JAK–STAT menor que a das células DPP4⁻.

  5. Sem reversão transcriptômica

    No LINCS/L1000 50,51, nem a vildagliptina nem o knockout ou knockdown de DPP4 reverteram de forma reprodutível três assinaturas humanas de ES.

  6. Sem apoio de genética humana

    Nenhum achado de GWAS, associação de locus ou eQTL em pele/fibroblasto liga o DPP4 à ES 21,52,53. A vildagliptina agiria sobre um efetor a jusante, não sobre uma causa; efeitos de fármacos tendem a ficar na vizinhança dos genes da doença na rede 48.

  7. Pré-clínico não é clínico

    Eficácia em modelos não garante benefício numa ES humana heterogênea 3,36.

  8. Não só DPP-4

    Em concentrações mais altas, a vildagliptina também inibe DPP-8, DPP-9 e FAP, e sua exposição na pele fibrótica é desconhecida 22.

Cada resultado, pelo seu papel na decisão

A posição indica o papel de cada resultado na decisão, não a força da evidência. Passe o cursor ou foque um item para ver o achado.

Veredito

Levar a vildagliptina a um experimento de prova de mecanismo relevante para a doença. Isto não é uma afirmação de eficácia clínica.

Dados humanos de ES definem um contexto reprodutível de fibroblasto e MEC para o DPP4. Programas fibróticos a jusante acompanham o mRSS. A perturbação experimental dá apoio causal antifibrótico 15, e a farmacologia humana sustenta o engajamento sistêmico do alvo 13.

A farmacologia dérmica está parcialmente desarriscada: a exposição cutânea necessária foi quantificada, mas a exposição real e o engajamento do alvo na pele com ES continuam sem medida.

O perfil de segurança é conhecido. Função hepática, pancreatite e reações cutâneas pedem monitoramento. A inibição de DPP-4 não parece prejudicar a cicatrização: num ensaio randomizado e controlado por placebo em úlceras de pé diabético, a vildagliptina se associou a melhor cicatrização 54.

O experimento que decide

Desenhado, ainda não realizado. Fibroblastos dérmicos primários de lesões de ES e de doadores saudáveis, com e sem TGFβ1. O desenho separa um fármaco que falhou de um alvo que falhou.

Braços

  1. Veículo
  2. Vildagliptina em concentrações guiadas pela exposição
  3. Knockdown de DPP4
  4. Knockdown + vildagliptina
  5. Nintedanibe (controle positivo)

Medidas

  • Engajamento do alvo atividade enzimática de DPP4
  • Fibroblasto ativado PRSS23 · THBS1
  • Miofibroblasto ACTA2 · TAGLN
  • Produção de matriz COL1A1 · colágeno solúvel
  • Função contração da matriz

Escolha o resultado de cada braço

O knockdown de DPP4 suprime o fenótipo
A vildagliptina suprime o fenótipo

Minha parte

Foi um projeto em equipe: cinco pessoas, sete dias, no Cortellis Drug Repositioning Hackathon (Clarivate e Hospital Israelita Albert Einstein, com a InovaUSP). Coliderei a análise computacional, do trabalho em célula única e em redes ao modelo farmacológico e ao notebook de evidências, e apresentei a proposta e seu caso de negócio.

As análises rodaram num cluster HPC com Slurm. O repositório público guarda o notebook que carrega os resultados congelados, confere cada arquivo pelo hash SHA-256 e gera as figuras. O pipeline em si não é público.

Métodos e ferramentas

  • Python
  • Scanpy · AnnData
  • Harmony
  • PAGA
  • decoupler · PROGENy · CollecTRI
  • STRING v12 · NetworkX
  • statsmodels · SciPy
  • Modelagem PK/PD
  • Plotly · Matplotlib
  • HPC com Slurm

Referências

Numeradas por ordem de primeira citação. Literatura conferida no PubMed. Fontes de dados acessadas em agosto de 2026.

  1. Distler, J. H. W. et al. Mechanisms of fibrotic tissue remodelling: insights from systemic sclerosis. Nat. Rev. Rheumatol. 22, 221-238 (2026).doi:10.1038/s41584-025-01349-zPMID 41588245
  2. Rinkevich, Y. et al. Skin fibrosis. Identification and isolation of a dermal lineage with intrinsic fibrogenic potential. Science 348, aaa2151 (2015).doi:10.1126/science.aaa2151PMID 25883361
  3. Tabib, T. et al. Myofibroblast transcriptome indicates SFRP2hi fibroblast progenitors in systemic sclerosis skin. Nat. Commun. 12, 4384 (2021).doi:10.1038/s41467-021-24607-6PMID 34282151
  4. Desai, R., Chawla, H., Larin, K. & Assassi, S. Methods for objective assessment of skin involvement in systemic sclerosis. Curr. Opin. Rheumatol. 35, 301-308 (2023).doi:10.1097/BOR.0000000000000968PMID 37605869
  5. Kumánovics, G. et al. Assessment of skin involvement in systemic sclerosis. Rheumatology (Oxford) 56, v53-v66 (2017).doi:10.1093/rheumatology/kex202PMID 28992173
  6. Del Galdo, F. et al. EULAR recommendations for the treatment of systemic sclerosis: 2023 update. Ann. Rheum. Dis. 84, 29-40 (2025).doi:10.1136/ard-2024-226430PMID 39874231
  7. Kowal-Bielecka, O. et al. Update of EULAR recommendations for the treatment of systemic sclerosis. Ann. Rheum. Dis. 76, 1327-1339 (2016).doi:10.1136/annrheumdis-2016-209909PMID 27941129
  8. Pellar, R. E. & Pope, J. E. Evidence-based management of systemic sclerosis: Navigating recommendations and guidelines. Semin. Arthritis Rheum. 46, 767-774 (2016).doi:10.1016/j.semarthrit.2016.12.003PMID 28088339
  9. Pavlov-Dolijanovic, S. et al. Rheumatologists' Adherence to EULAR Recommendations for Systemic Sclerosis Treatment: Experience of a Single Center in Serbia. J. Clin. Med. 14, 4994 (2025).doi:10.3390/jcm14144994PMID 40725689
  10. Sieiro Santos, C. & Del Galdo, F. New horizons in systemic sclerosis treatment: advances and emerging therapies in 2025. RMD Open 11, e005776 (2025).doi:10.1136/rmdopen-2025-005776PMID 40592721
  11. Khanna, D. et al. A randomised, parallel-group, double-blind, placebo-controlled phase 3 study to Determine the effectiveness of the type I interferon receptor antibody, Anifrolumab, In SYstemic sclerosis: DAISY study design and rationale. Clin. Exp. Rheumatol. 42, 1635-1644 (2024).doi:10.55563/clinexprheumatol/s8qcyuPMID 39152751
  12. Brandt, I. et al. Inhibition of dipeptidyl-peptidase IV catalyzed peptide truncation by Vildagliptin ((2S)-{[(3-hydroxyadamantan-1-yl)amino]acetyl}-pyrrolidine-2-carbonitrile). Biochem. Pharmacol. 70, 134-43 (2005).doi:10.1016/j.bcp.2005.04.009PMID 15907807
  13. Ahrén, B. et al. Mechanisms of action of the dipeptidyl peptidase-4 inhibitor vildagliptin in humans. Diabetes Obes. Metab. 13, 775-83 (2011).doi:10.1111/j.1463-1326.2011.01414.xPMID 21507182
  14. Liu, Y. & Qi, Y. Vildagliptin, a CD26/DPP4 inhibitor, ameliorates bleomycin-induced pulmonary fibrosis via regulating the extracellular matrix. Int. Immunopharmacol. 87, 106774 (2020).doi:10.1016/j.intimp.2020.106774PMID 32731178
  15. Soare, A. et al. Dipeptidylpeptidase 4 as a Marker of Activated Fibroblasts and a Potential Target for the Treatment of Fibrosis in Systemic Sclerosis. Arthritis Rheumatol. 72, 137-149 (2020).doi:10.1002/art.41058PMID 31350829
  16. Sinnathurai, P. et al. Circulating fibroblast activation protein and dipeptidyl peptidase 4 in rheumatoid arthritis and systemic sclerosis. Int. J. Rheum. Dis. 21, 1915-1923 (2016).doi:10.1111/1756-185X.13031PMID 27990763
  17. Deng, C. C. et al. Single-cell RNA-seq reveals fibroblast heterogeneity and increased mesenchymal fibroblasts in human fibrotic skin diseases. Nat. Commun. 12, 3709 (2021).doi:10.1038/s41467-021-24110-yPMID 34140509
  18. Low, A. H. L. et al. Evaluation of Scleroderma Clinical Trials Consortium training recommendations on modified Rodnan skin score assessment in scleroderma. Int. J. Rheum. Dis. 22, 1036-1040 (2019).doi:10.1111/1756-185X.13523PMID 30838791
  19. Khanna, D., Huang, S., Lin, C. J. F. & Spino, C. New composite endpoint in early diffuse cutaneous systemic sclerosis: revisiting the provisional American College of Rheumatology Composite Response Index in Systemic Sclerosis. Ann. Rheum. Dis. 80, 641-650 (2020).doi:10.1136/annrheumdis-2020-219100PMID 33257497
  20. ClinicalTrials.gov API v2, query dated 29 August 2026 (gliptins × systemic sclerosis, scleroderma, morphea). (2026).clinicaltrials.gov/data-api/api
  21. Open Targets Platform. (accessed 2026).platform.opentargets.org
  22. Cortellis Drug Discovery Intelligence (Clarivate): vildagliptin pharmacology record (DPP-4 IC50 median of 68 in vitro measurements; off-target potencies), reviewed manually August 2026. (2026).clarivate.com/cortellis
  23. Lee, S. Y. et al. Soluble Dipeptidyl Peptidase-4 Induces Fibroblast Activation Through Proteinase-Activated Receptor-2. Front. Pharmacol. 11, 552818 (2020).doi:10.3389/fphar.2020.552818PMID 33117158
  24. Zeyer, K. A. et al. Dipeptidyl Peptidase-4-Mediated Fibronectin Processing Evokes a Profibrotic Extracellular Matrix. J. Invest. Dermatol. 144, 2477-2487.e13 (2024).doi:10.1016/j.jid.2024.03.020PMID 38570029
  25. Pei, B., Zhang, N., Pang, T. & Sun, G. Linagliptin ameliorates pulmonary fibrosis in systemic sclerosis mouse model via inhibition of endothelial-to-mesenchymal transition. Mol. Cell. Biochem. 477, 995-1007 (2022).doi:10.1007/s11010-021-04349-1PMID 34988855
  26. Vorstandlechner, V. et al. The serine proteases dipeptidyl-peptidase 4 and urokinase are key molecules in human and mouse scar formation. Nat. Commun. 12, 6242 (2021).doi:10.1038/s41467-021-26495-2PMID 34716325
  27. Helm, M. et al. Repurposing DPP4 Inhibition to Improve Hair Follicle Activation and Regeneration. J. Invest. Dermatol. 143, 2132-2144.e15 (2023).doi:10.1016/j.jid.2023.04.027PMID 37236597
  28. Zhang, J. L. et al. Sustained-Release Sitagliptin Microneedles for Scar Prevention via Fibroblast-to-Adipocyte Conversion. Small Sci. 5, e202500140 (2025).doi:10.1002/smsc.202500140PMID 41395508
  29. Yin, M. et al. TGFβ-mediated inhibition of hypodermal adipocyte progenitor differentiation promotes wound-induced skin fibrosis. Cell Prolif. 58, e13722 (2024).doi:10.1111/cpr.13722PMID 39072821
  30. Suwanai, H., Watanabe, R., Sato, M., Odawara, M. & Matsumura, H. Dipeptidyl Peptidase-4 Inhibitor Reduces the Risk of Developing Hypertrophic Scars and Keloids following Median Sternotomy in Diabetic Patients: A Nationwide Retrospective Cohort Study Using the National Database of Health Insurance Claims of Japan. Plast. Reconstr. Surg. 146, 83-89 (2020).doi:10.1097/PRS.0000000000006904PMID 32590649
  31. Wang, P. et al. Dipeptidyl Peptidase-4 Inhibitor Reduces the Risk of Developing Hypertrophic Scars and Keloids following Median Sternotomy in Diabetic Patients: A Nationwide Retrospective Cohort Study Using the National Database of Health Insurance Claims of Japan. Plast. Reconstr. Surg. 147, 1067e-1068e (2021).doi:10.1097/PRS.0000000000007935PMID 33961605Letter/comment on Suwanai et al. 2020 (same title).
  32. Assassi, S. et al. Skin gene expression correlates of severity of interstitial lung disease in systemic sclerosis. Arthritis Rheum. 65, 2917-27 (2013).doi:10.1002/art.38101PMID 23897225
  33. Skaug, B. et al. Global skin gene expression analysis of early diffuse cutaneous systemic sclerosis shows a prominent innate and adaptive inflammatory profile. Ann. Rheum. Dis. 79, 379-386 (2019).doi:10.1136/annrheumdis-2019-215894PMID 31767698
  34. Skaug, B. et al. Large-scale analysis of longitudinal skin gene expression in systemic sclerosis reveals relationships of immune cell and fibroblast activity with skin thickness and a trend towards normalisation over time. Ann. Rheum. Dis. 81, 516-523 (2021).doi:10.1136/annrheumdis-2021-221352PMID 34937693
  35. Clark, K. E. N. et al. Integrated analysis of dermal blister fluid proteomics and genome-wide skin gene expression in systemic sclerosis: an observational study. Lancet Rheumatol. 4, e507-e516 (2022).doi:10.1016/S2665-9913(22)00094-7PMID 36404995
  36. Ohm, B., Moneke, I. & Jungraithmayr, W. Targeting cluster of differentiation 26 / dipeptidyl peptidase 4 (CD26/DPP4) in organ fibrosis. Br. J. Pharmacol. 180, 2846-2861 (2022).doi:10.1111/bph.15967PMID 36196001
  37. NCBI Gene Expression Omnibus GSE58095: skin gene expression in systemic sclerosis (bulk). (accessed 2026).www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE58095
  38. Reactome pathway knowledgebase. (accessed 2026).reactome.org
  39. NCBI Gene Expression Omnibus GSE138669: single-cell RNA-seq of systemic sclerosis and healthy skin. (accessed 2026).www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE138669
  40. Wolf, F. A., Angerer, P. & Theis, F. J. SCANPY: large-scale single-cell gene expression data analysis. Genome Biol. 19, 15 (2018).doi:10.1186/s13059-017-1382-0PMID 29409532
  41. Korsunsky, I. et al. Fast, sensitive and accurate integration of single-cell data with Harmony. Nat. Methods 16, 1289-1296 (2019).doi:10.1038/s41592-019-0619-0PMID 31740819
  42. NCBI Gene Expression Omnibus GSE249279: single-cell RNA-seq of systemic sclerosis skin (independent cohort). (accessed 2026).www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE249279
  43. Wolf, F. A. et al. PAGA: graph abstraction reconciles clustering with trajectory inference through a topology preserving map of single cells. Genome Biol. 20, 59 (2019).doi:10.1186/s13059-019-1663-xPMID 30890159
  44. Badia-I-Mompel, P. et al. decoupleR: ensemble of computational methods to infer biological activities from omics data. Bioinform. Adv. 2, vbac016 (2022).doi:10.1093/bioadv/vbac016PMID 36699385
  45. Schubert, M. et al. Perturbation-response genes reveal signaling footprints in cancer gene expression. Nat. Commun. 9, 20 (2018).doi:10.1038/s41467-017-02391-6PMID 29295995
  46. Müller-Dott, S. et al. Expanding the coverage of regulons from high-confidence prior knowledge for accurate estimation of transcription factor activities. Nucleic Acids Res. 51, 10934-10949 (2023).doi:10.1093/nar/gkad841PMID 37843125
  47. Szklarczyk, D. et al. The STRING database in 2023: protein-protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 51, D638-D646 (2023).doi:10.1093/nar/gkac1000PMID 36370105
  48. Guney, E., Menche, J., Vidal, M. & Barábasi, A. L. Network-based in silico drug efficacy screening. Nat. Commun. 7, 10331 (2016).doi:10.1038/ncomms10331PMID 26831545
  49. NCBI Gene Expression Omnibus GSE181549: skin gene expression with baseline mRSS in systemic sclerosis. (accessed 2026).www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE181549
  50. Subramanian, A. et al. A Next Generation Connectivity Map: L1000 Platform and the First 1,000,000 Profiles. Cell 171, 1437-1452.e17 (2017).doi:10.1016/j.cell.2017.10.049PMID 29195078
  51. SigCom LINCS: LINCS L1000 signature search. (accessed 2026).maayanlab.cloud/sigcom-lincs
  52. NHGRI-EBI GWAS Catalog. (accessed 2026).www.ebi.ac.uk/gwas
  53. GTEx Portal. (accessed 2026).gtexportal.org
  54. Vangaveti, V. N. et al. Effects of vildagliptin on wound healing and markers of inflammation in patients with type 2 diabetic foot ulcer: a prospective, randomized, double-blind, placebo-controlled, single-center study. Diabetol. Metab. Syndr. 14, 183 (2022).doi:10.1186/s13098-022-00938-2PMID 36456992